Teori: Enzim dan Metabolisme
1. Metabolisme adalah Jaringan Reaksi yang Terintegrasi
Metabolisme mencakup seluruh reaksi kimia yang berlangsung di dalam sel atau organisme. Reaksi-reaksi tersebut tersusun dalam jalur: produk suatu tahap menjadi reaktan tahap berikutnya, lalu cabang-cabang jalur saling terhubung. Sel mengatur jalur itu berdasarkan ketersediaan bahan, kebutuhan energi, keadaan lingkungan, dan sinyal pengatur.
Metabolisme memiliki dua arah umum.
| Aspek |
Katabolisme |
Anabolisme |
| perubahan |
molekul kompleks diuraikan menjadi lebih sederhana |
molekul sederhana disusun menjadi lebih kompleks |
| energi |
sebagian energi dilepaskan dan ditangkap |
memerlukan masukan energi |
| pembawa elektron yang sering terlibat |
NAD+ dan FAD menerima elektron menjadi NADH dan FADH2 |
NADPH sering menyumbangkan elektron untuk biosintesis |
| contoh |
respirasi seluler, penguraian asam lemak |
sintesis protein, sintesis asam lemak, siklus Calvin |
Pemisahan itu membantu memahami arah reaksi, tetapi kedua kelompok tidak bekerja terpisah. Energi dari katabolisme dapat ditangkap dalam ATP dan pembawa elektron, kemudian digunakan untuk anabolisme. Senyawa antara dari respirasi juga dapat menjadi bahan sintesis biomolekul.
ATP memindahkan energi melalui reaksi yang saling dikopel. Hidrolisis ATP dapat digabungkan dengan proses yang memerlukan energi, misalnya transpor aktif atau pembentukan ikatan kimia. ATP bukan tempat penyimpanan energi jangka panjang; sel terus membentuk dan menggunakannya.
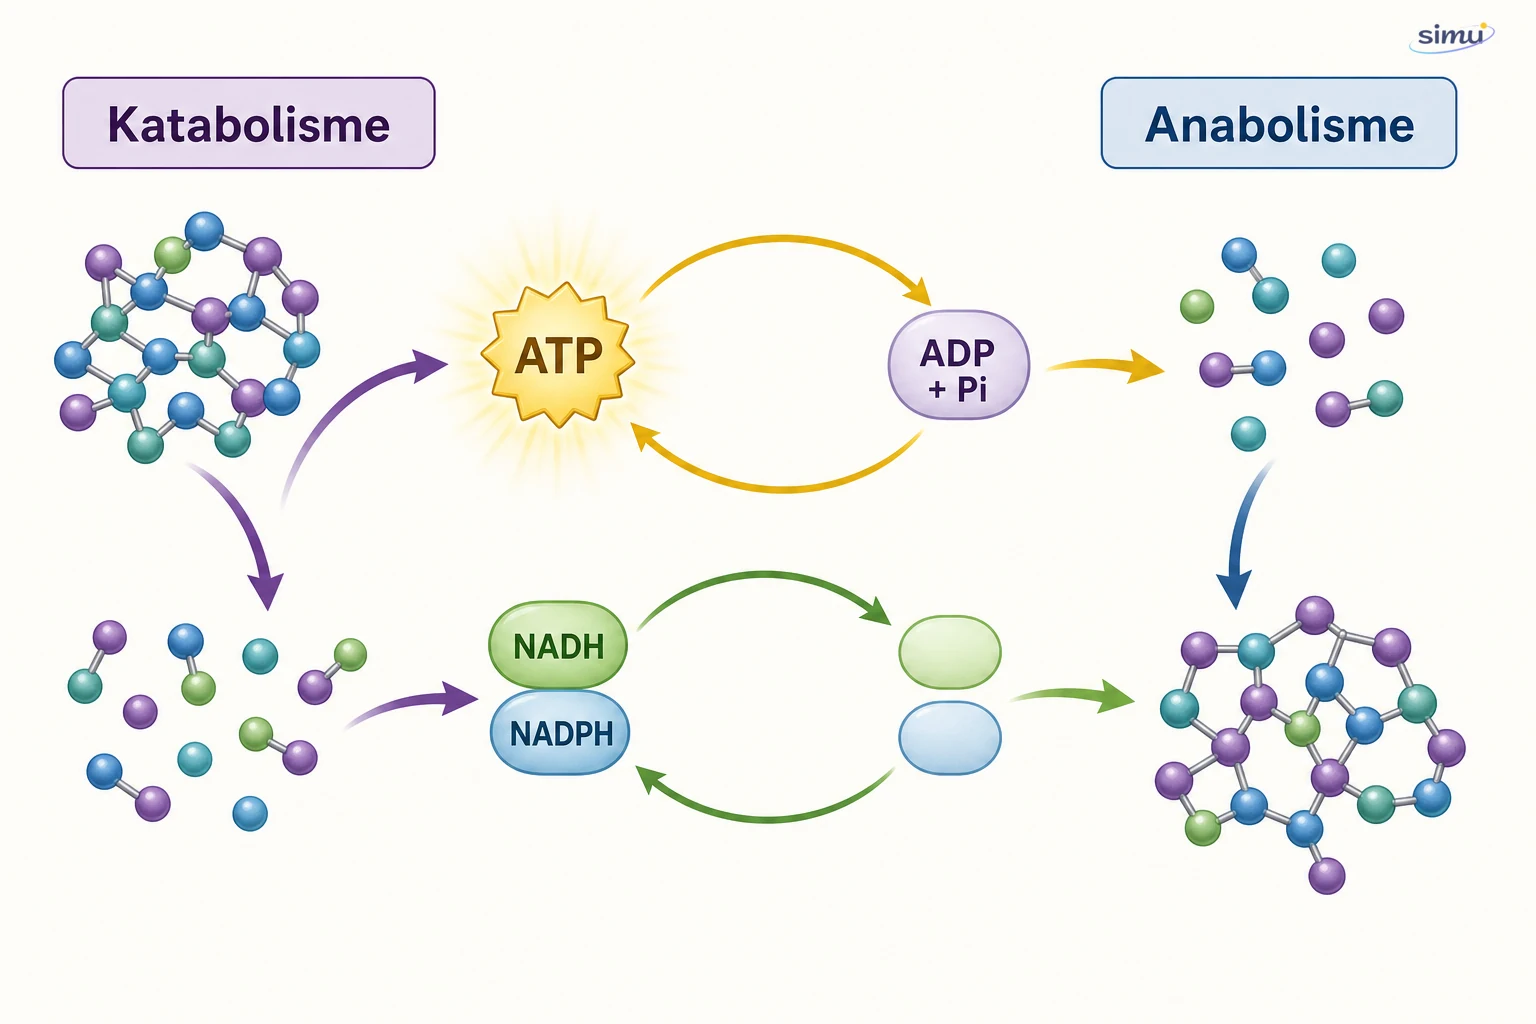
Gambar 2. Katabolisme menguraikan molekul dan menangkap sebagian energi, sedangkan anabolisme menggunakan ATP serta daya reduksi untuk menyusun molekul; ATP dan pembawa elektron terus didaur ulang.
2. Enzim sebagai Katalis Biologis
Banyak reaksi yang secara termodinamika mungkin terjadi tetap berlangsung terlalu lambat pada suhu sel. Reaksi perlu melewati keadaan transisi yang berenergi tinggi. Selisih energi antara reaktan dan keadaan transisi disebut energi aktivasi.
Enzim mempercepat reaksi dengan menstabilkan keadaan transisi atau menyediakan jalur reaksi alternatif dengan energi aktivasi lebih rendah. Enzim dapat mendekatkan substrat, mengatur orientasinya, meregangkan ikatan tertentu, atau menciptakan lingkungan kimia yang sesuai.
Enzim:
- mempercepat tercapainya kesetimbangan, tetapi tidak mengubah posisi kesetimbangan;
- tidak mengubah selisih energi bebas antara reaktan dan produk;
- tidak habis secara permanen dalam satu siklus reaksi; dan
- tidak membuat reaksi yang secara energi tidak mungkin menjadi spontan.
Sebagian besar enzim adalah protein. Namun, ada RNA katalitik yang disebut ribozim, sehingga pernyataan "semua enzim pasti protein" memiliki pengecualian.
Sisi aktif dan spesifisitas
Substrat adalah reaktan yang berikatan dengan enzim. Ikatan berlangsung pada sisi aktif, daerah tiga dimensi yang dibentuk oleh susunan asam amino tertentu. Kecocokan melibatkan bentuk, muatan, kepolaran, dan interaksi kimia lain.
Skema sederhana reaksi enzimatis dapat ditulis:
E+S⇌ES→E+P
E adalah enzim, S substrat, ES kompleks enzim-substrat, dan P produk. Skema tersebut tidak berarti semua reaksi hanya mempunyai satu substrat atau satu produk. Spesifisitas juga bertingkat: ada enzim yang sangat selektif terhadap satu molekul, ada pula yang bekerja pada sekelompok substrat serupa.
Model gembok-kunci dan induksi cocok
Model gembok-kunci menggambarkan sisi aktif seolah-olah telah memiliki bentuk yang pas dengan substrat. Model ini berguna untuk memperkenalkan spesifisitas, tetapi terlalu kaku.
Model induksi cocok menjelaskan bahwa interaksi awal dengan substrat dapat mengubah konformasi enzim. Perubahan itu menempatkan gugus-gugus katalitik pada posisi yang lebih sesuai. Setelah produk dilepas, enzim dapat kembali ke konformasi awal atau keadaan yang mendekatinya. Model ini lebih baik menjelaskan sifat dinamis protein.
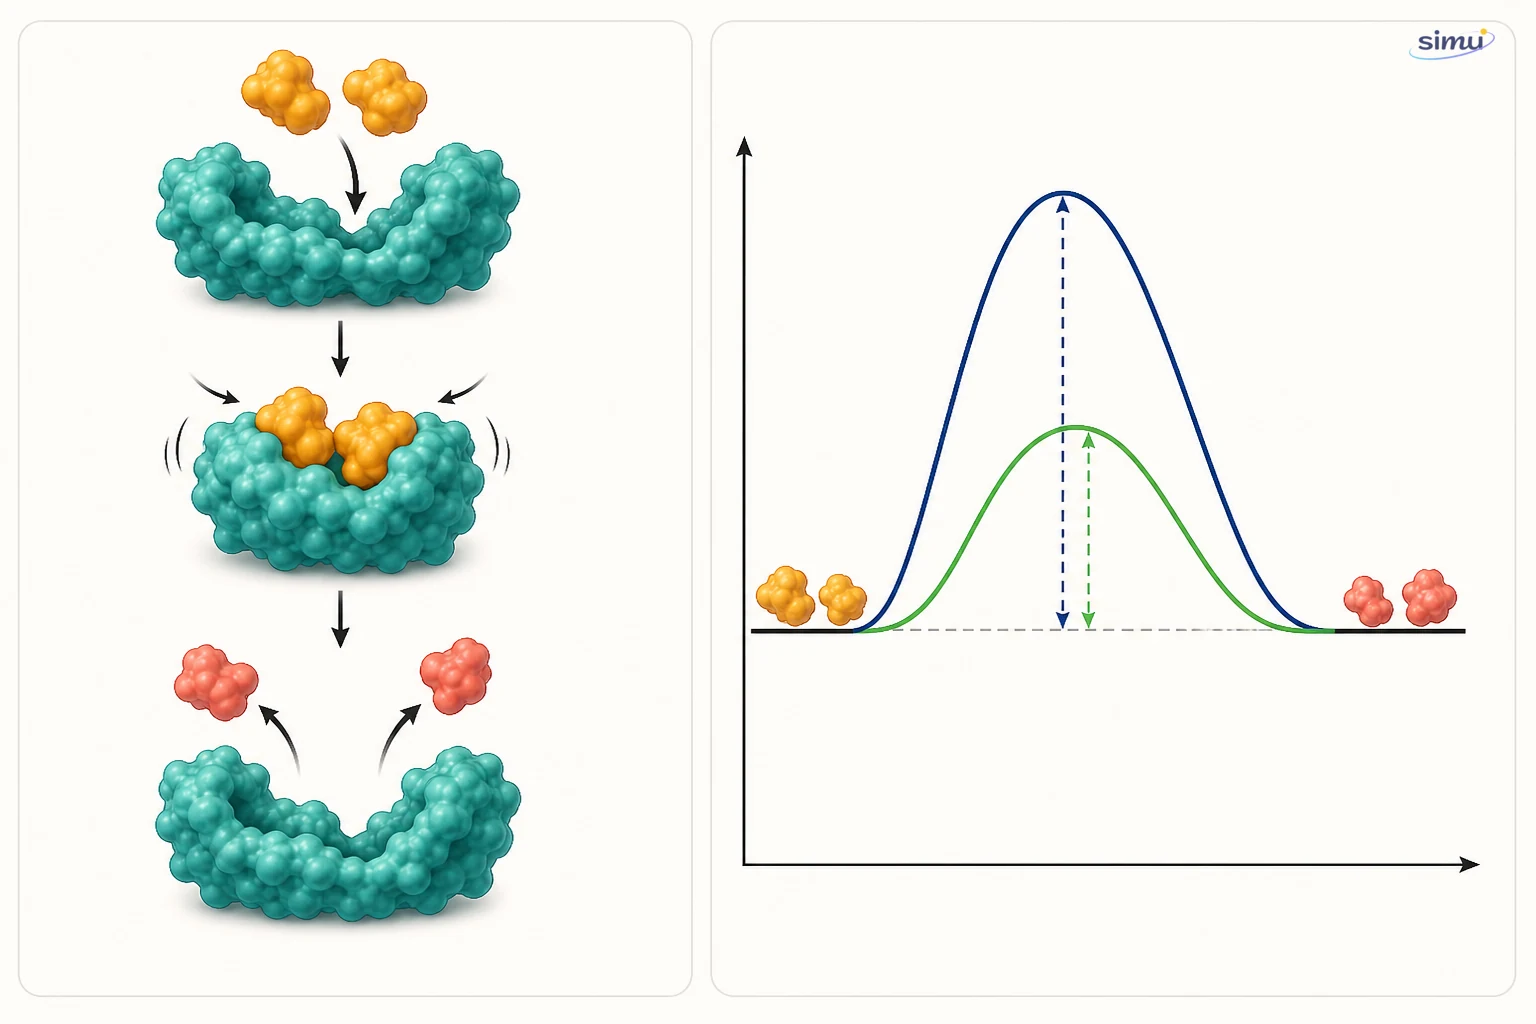
Gambar 3. Substrat memicu penyesuaian bentuk sisi aktif, produk kemudian dilepas, dan enzim dapat digunakan kembali. Jalur berkatalis memiliki puncak energi aktivasi lebih rendah tanpa mengubah energi awal dan akhir reaksi.
3. Kofaktor, Koenzim, dan Bentuk Aktif Enzim
Sebagian enzim memerlukan komponen nonprotein agar aktif.
- Kofaktor adalah istilah umum untuk komponen tambahan, termasuk ion logam seperti Mg2+, Zn2+, atau Fe2+/Fe3+.
- Koenzim adalah kofaktor organik, sering diturunkan dari vitamin. NAD+ dan koenzim A merupakan contoh.
- Gugus prostetik adalah kofaktor yang terikat sangat kuat atau menetap pada enzim.
- Apoenzim adalah bagian protein yang belum dilengkapi kofaktor yang diperlukan.
- Holoenzim adalah kompleks aktif apoenzim beserta kofaktornya.
Istilah itu tidak boleh dipertukarkan sembarangan. Semua koenzim adalah kofaktor, tetapi tidak semua kofaktor adalah koenzim.
4. Faktor yang Memengaruhi Laju Reaksi Enzimatis
Suhu
Kenaikan suhu dalam rentang tertentu meningkatkan gerak molekul dan frekuensi tumbukan efektif. Laju reaksi biasanya naik sampai rentang optimum. Pada suhu terlalu tinggi, interaksi yang mempertahankan struktur protein dapat terganggu sehingga sisi aktif berubah dan aktivitas turun.
Suhu rendah biasanya memperlambat reaksi secara reversibel; suhu rendah tidak otomatis "menggumpalkan" atau merusak semua enzim. Setelah dikembalikan ke suhu sesuai, aktivitas dapat pulih jika struktur enzim tidak rusak.
pH
pH memengaruhi muatan gugus asam amino pada sisi aktif dan kestabilan interaksi dalam protein. Setiap enzim mempunyai rentang pH kerja yang dipengaruhi lingkungan alaminya. Pepsin aktif pada kondisi lambung yang asam, sedangkan enzim lain bekerja lebih baik mendekati netral. pH ekstrem dapat menurunkan aktivitas atau menyebabkan denaturasi.
Konsentrasi substrat dan enzim
Ketika konsentrasi enzim tetap, penambahan substrat mula-mula menaikkan laju karena lebih banyak sisi aktif terisi. Pada konsentrasi tinggi, hampir semua sisi aktif bekerja sehingga laju mendekati maksimum. Penambahan substrat berikutnya memberi peningkatan kecil.
Jika substrat tersedia berlebih, penambahan enzim dapat menaikkan laju karena jumlah sisi aktif bertambah. Namun, hubungan itu hanya berlaku jika faktor lain tidak menjadi pembatas.
Inhibitor dan regulator
| Jenis pengaruh |
Cara kerja umum |
Akibat yang dapat diamati |
| inhibitor kompetitif |
bersaing dengan substrat pada sisi aktif |
pengaruh dapat dikurangi dengan menaikkan konsentrasi substrat dalam kondisi tertentu |
| inhibitor nonkompetitif sederhana |
berikatan di tempat lain dan menurunkan jumlah enzim yang efektif |
penambahan substrat tidak sepenuhnya memulihkan laju maksimum |
| regulator alosterik |
berikatan pada tempat pengatur dan mengubah konformasi |
dapat menghambat atau mengaktifkan |
| inhibitor irreversibel |
membentuk ikatan sangat kuat atau merusak gugus penting |
aktivitas tidak pulih hanya dengan menghilangkan inhibitor bebas |
Pada inhibisi umpan balik, produk akhir suatu jalur menghambat enzim pada tahap awal. Mekanisme ini mencegah pemborosan bahan dan energi. Jalur metabolisme juga diatur melalui fosforilasi protein, jumlah enzim yang dibuat, lokasi enzim, dan ketersediaan substrat.
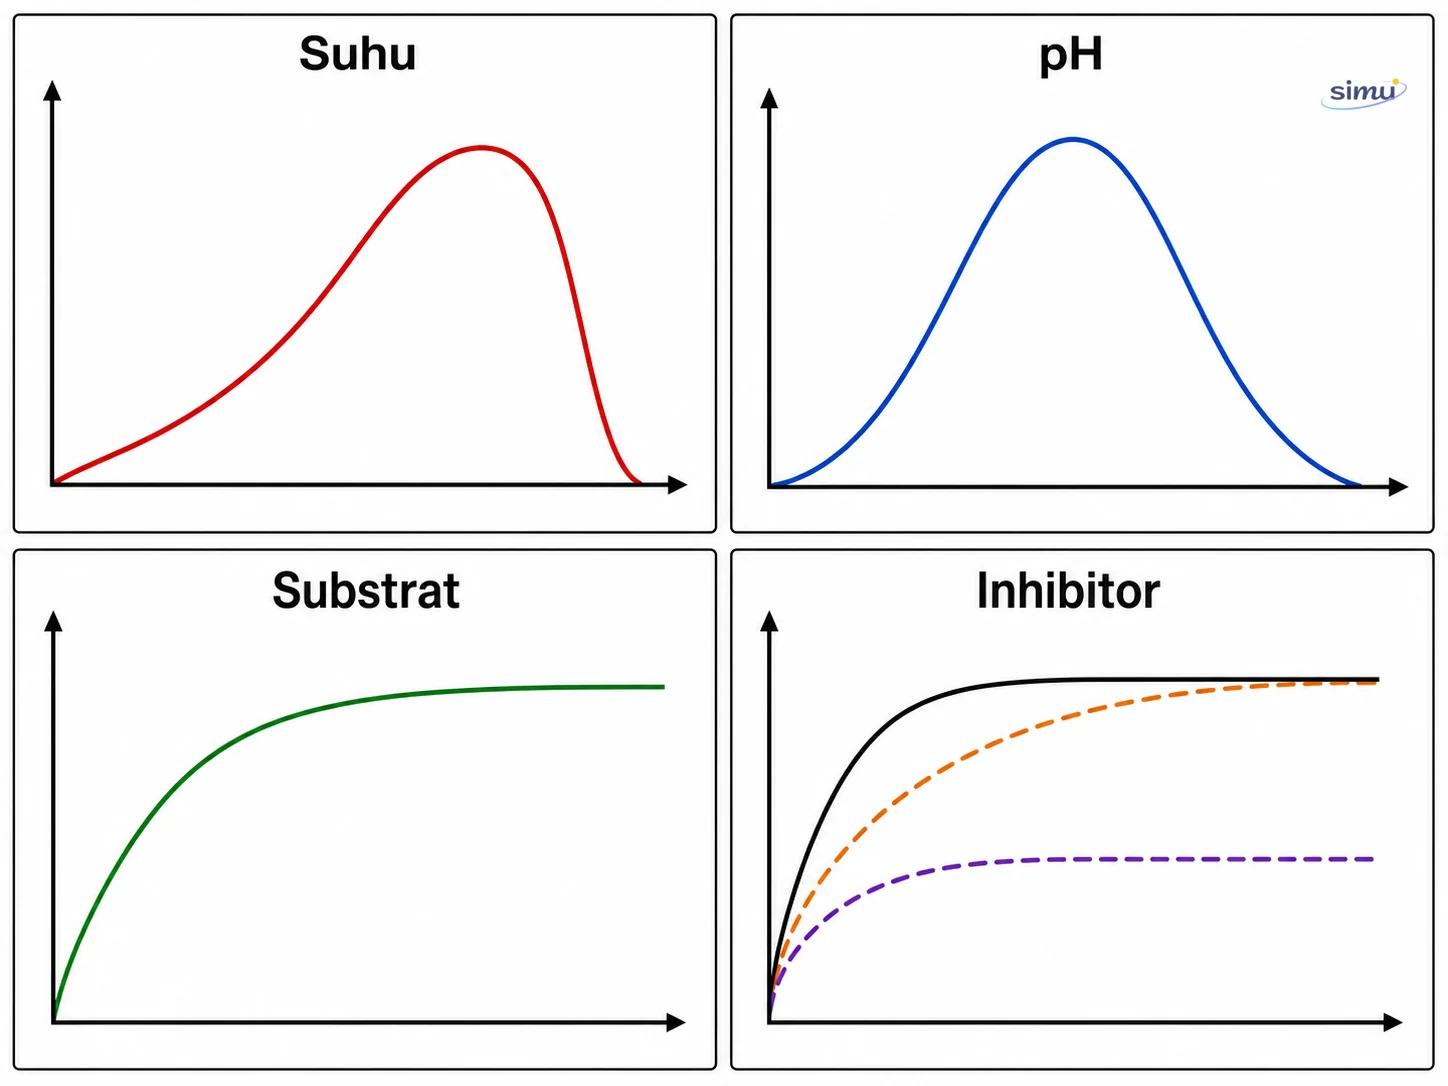
Gambar 4. Suhu dan pH menunjukkan rentang optimum, kenaikan substrat mendekati kejenuhan, inhibitor kompetitif masih dapat mendekati plateau kontrol pada substrat tinggi, sedangkan inhibitor nonkompetitif sederhana menurunkan plateau.
5. Menyelidiki Aktivitas Enzim
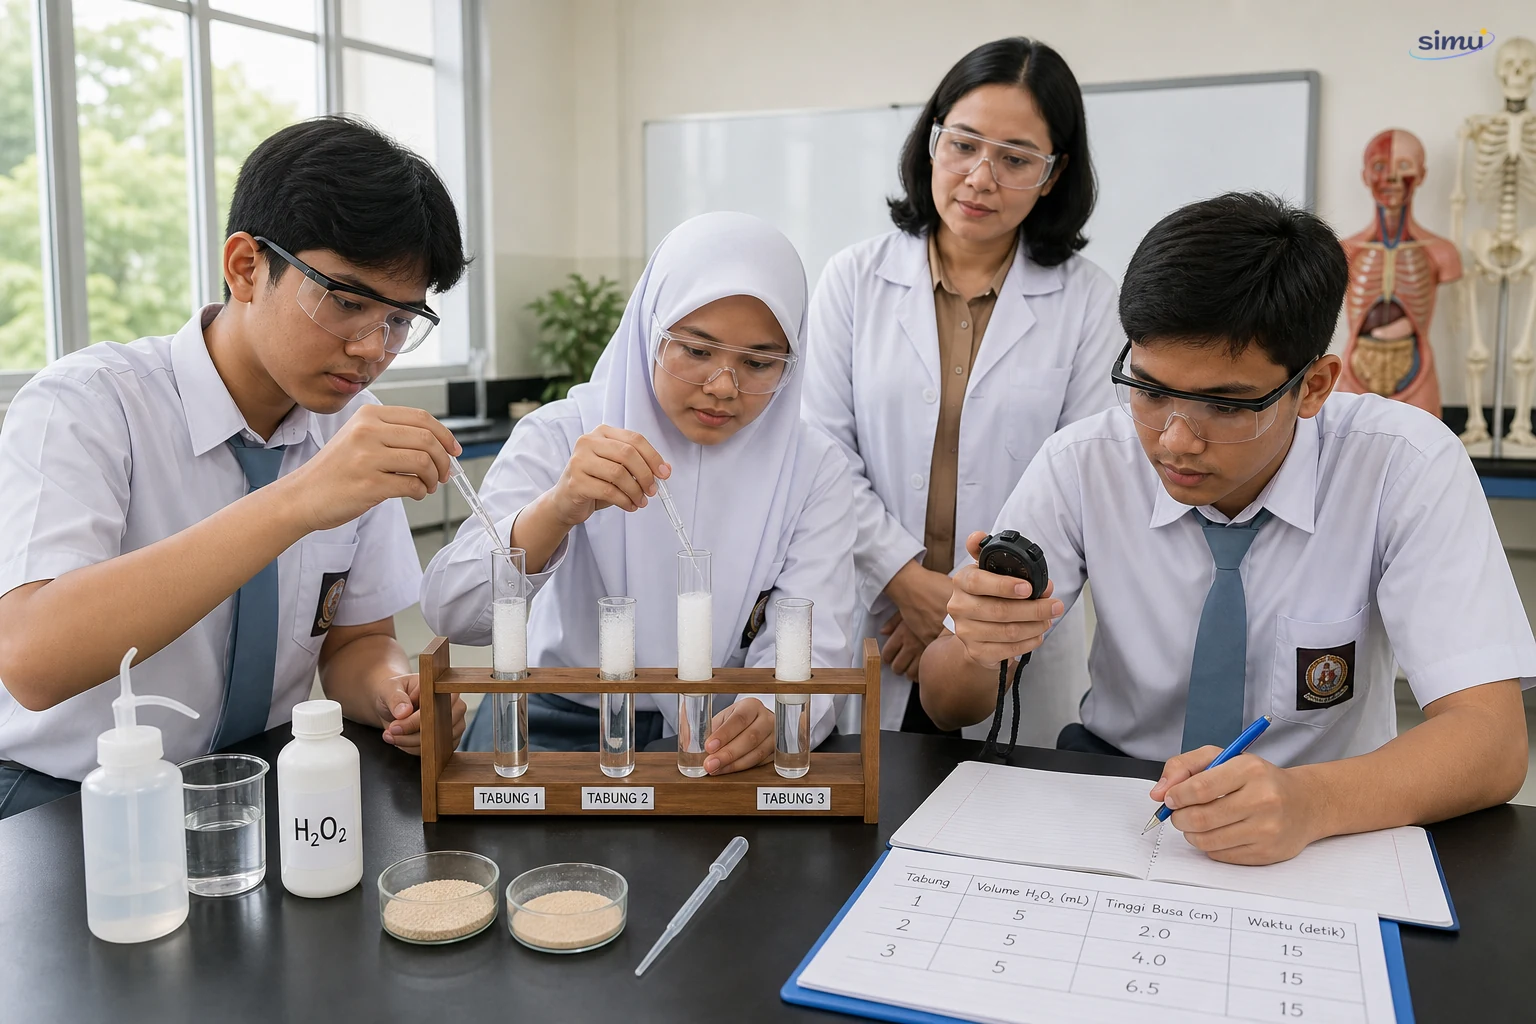
Aktivitas enzim sebaiknya diukur sebagai laju, yaitu perubahan jumlah substrat atau produk per satuan waktu. Tinggi busa pada satu waktu dapat menjadi indikator, tetapi volume gas per menit atau perubahan absorbansi per menit lebih langsung menggambarkan laju.
Contoh aman untuk kegiatan sekolah adalah mengamati katalase dari ragi dengan hidrogen peroksida berkonsentrasi rendah. Katalase mempercepat reaksi:
2H2O2→2H2O+O2
Rancangan yang baik mencakup:
- satu variabel bebas yang diubah;
- indikator laju yang didefinisikan;
- kelompok kontrol;
- volume, konsentrasi, waktu, dan jumlah enzim yang dikendalikan;
- pengulangan dan pelaporan variasi; serta
- prosedur keselamatan, termasuk pelindung mata dan pengawasan guru.
Jika menguji suhu, larutan sebaiknya diseimbangkan pada suhu sasaran sebelum reaksi dimulai. Jika menguji pH, gunakan larutan penyangga agar pH tidak berubah selama reaksi. Tanpa kontrol, perbedaan busa dapat disebabkan pencampuran, ukuran wadah, atau jumlah ragi, bukan variabel yang dimaksud.
6. Respirasi Seluler: Menangkap Energi dari Bahan Organik
Respirasi seluler memindahkan elektron dari molekul organik menuju akseptor akhir sambil menangkap sebagian energi dalam ATP. Persamaan ringkas respirasi aerob glukosa adalah:
C6H12O6+6O2→6CO2+6H2O+energi
Persamaan itu merangkum banyak tahap, bukan satu reaksi langsung. Pada sel eukariot, glikolisis berlangsung di sitosol, oksidasi piruvat dan siklus asam sitrat di matriks mitokondria, sedangkan rantai transpor elektron serta ATP sintase berada pada membran dalam mitokondria.
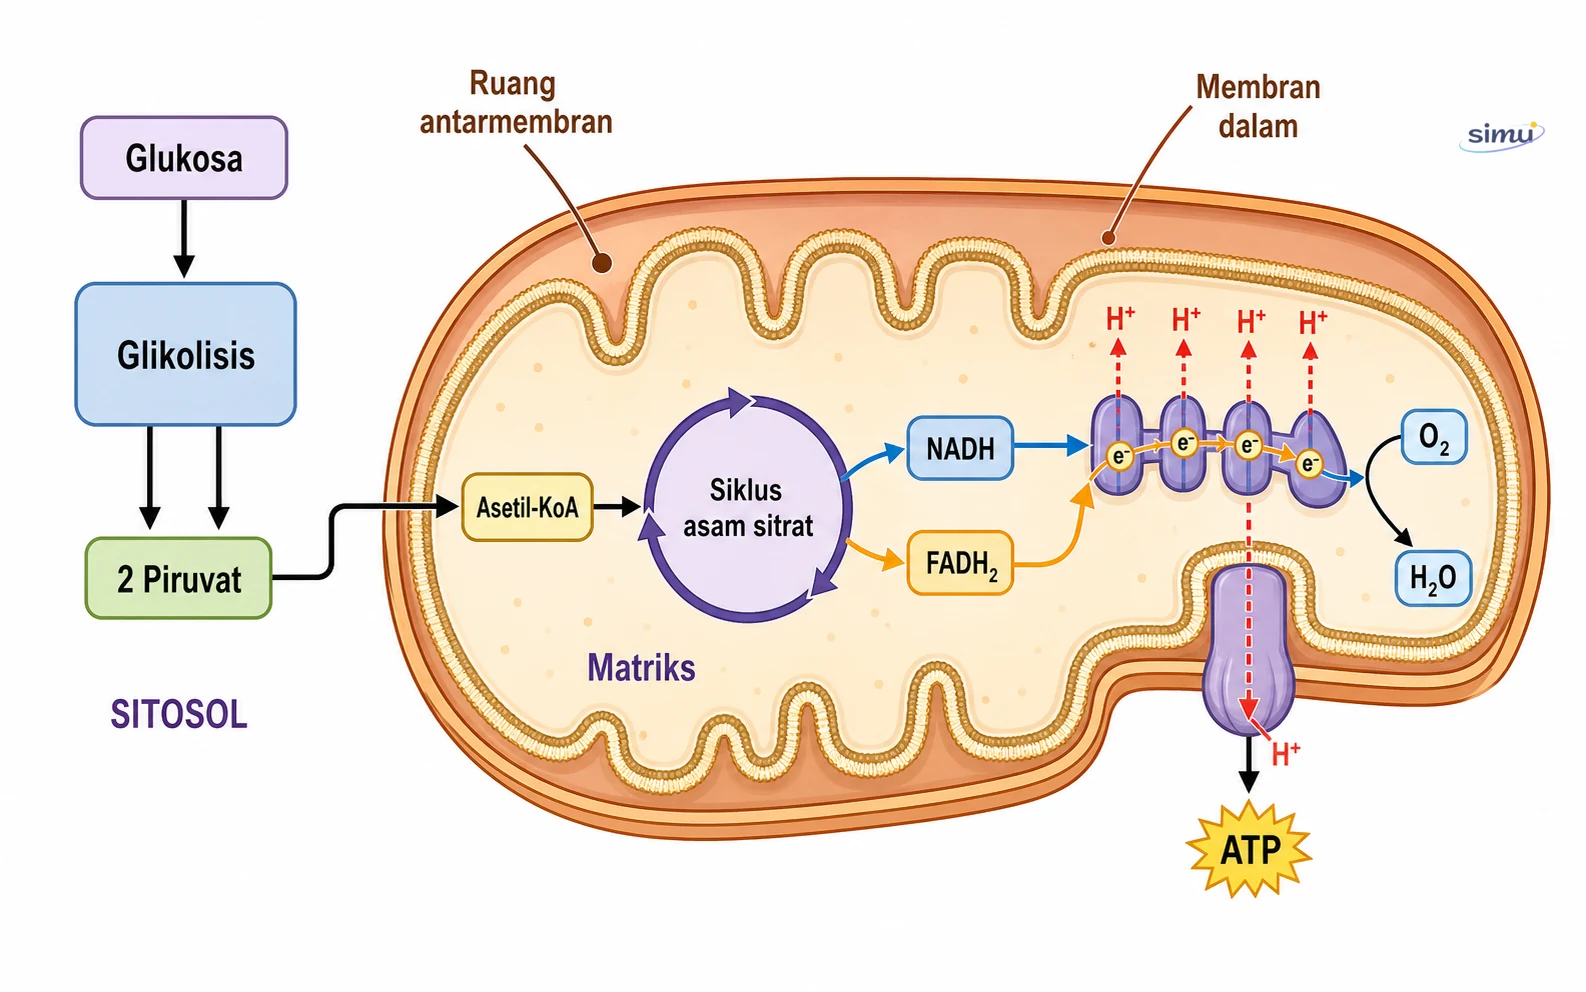
Gambar 5. Glikolisis berlangsung di sitosol; oksidasi piruvat dan siklus asam sitrat berlangsung di matriks; rantai transpor elektron memompa H+ melintasi membran dalam, lalu aliran balik H+ melalui ATP sintase mendorong pembentukan ATP.
Glikolisis
Glikolisis memecah satu glukosa berkarbon enam menjadi dua piruvat berkarbon tiga. Tahap awal menggunakan 2 ATP, lalu tahap hasil membentuk 4 ATP dan 2 NADH. Hasil bersih per glukosa adalah:
- 2 piruvat;
- 2 ATP bersih; dan
- 2 NADH.
ATP glikolisis terbentuk melalui fosforilasi tingkat substrat, yaitu pemindahan fosfat langsung dari molekul antara ke ADP. Oksigen tidak dipakai langsung dalam glikolisis.
Oksidasi piruvat
Jika respirasi aerob berlanjut, setiap piruvat masuk ke matriks mitokondria dan diubah menjadi asetil-KoA. Per satu glukosa, tahap ini menghasilkan:
- 2 asetil-KoA;
- 2 CO2; dan
- 2 NADH.
Karbon dioksida pertama dari penguraian glukosa dilepas pada tahap ini, bukan pada glikolisis.
Siklus asam sitrat
Asetil-KoA menyumbangkan gugus asetil dua karbon yang bergabung dengan oksaloasetat. Serangkaian reaksi kemudian meregenerasi oksaloasetat. Per satu glukosa, dua putaran siklus secara umum menghasilkan:
- 4 CO2;
- 6 NADH;
- 2 FADH2; dan
- 2 ATP atau GTP.
Siklus tidak memakai O2 secara langsung. Namun, kelanjutannya bergantung secara tidak langsung pada rantai transpor elektron yang mengoksidasi kembali NADH dan FADH2. Tanpa akseptor elektron akhir, persediaan NAD+ dan FAD menjadi terbatas.
Fosforilasi oksidatif
NADH dan FADH2 menyerahkan elektron kepada rantai transpor elektron di membran dalam mitokondria. Energi perpindahan elektron digunakan untuk memompa H+ dari matriks ke ruang antarmembran. Gradien elektrokimia H+ kemudian menggerakkan ATP sintase untuk membentuk ATP. Penggunaan gradien ion untuk kerja sel disebut kemiosmosis.
Oksigen adalah akseptor elektron terakhir. Oksigen menerima elektron dan H+ sehingga terbentuk air. Bila O2 tidak tersedia, aliran elektron berhenti dan NADH tidak dapat terus dioksidasi melalui rantai tersebut.
Fosforilasi oksidatif biasanya menghasilkan sekitar 26-28 ATP per glukosa. Bersama fosforilasi tingkat substrat, hasil total respirasi aerob pada banyak sel eukariot diperkirakan sekitar 30-32 ATP per glukosa. Nilai itu bukan angka mutlak karena dipengaruhi sistem pemindah elektron NADH sitosolik, kebocoran proton, dan kebutuhan transpor membran.
7. Fermentasi Mempertahankan Glikolisis
Ketika rantai transpor elektron tidak dapat mengoksidasi NADH dengan cukup cepat, sel memerlukan cara lain untuk meregenerasi NAD+. Fermentasi memindahkan elektron dari NADH ke turunan piruvat sehingga NAD+ tersedia kembali untuk glikolisis.
Fermentasi laktat
Piruvat menerima elektron dari NADH dan menjadi laktat. Tidak ada CO2 yang dilepas pada tahap ini. Proses terjadi pada beberapa mikroorganisme dan dapat meningkat pada sel otot ketika kebutuhan ATP melampaui kemampuan respirasi aerob.
Laktat bukan semata-mata "limbah penyebab pegal". Laktat dapat dipindahkan dan digunakan kembali sebagai bahan bakar atau bahan pembentukan glukosa. Rasa lelah dan nyeri setelah aktivitas melibatkan banyak faktor.
Fermentasi alkohol
Pada ragi dan beberapa mikroorganisme, piruvat melepaskan CO2 menjadi asetaldehida. Asetaldehida menerima elektron dari NADH dan menjadi etanol. Gas CO2 membantu mengembangkan adonan roti.
Fermentasi tidak menambah banyak ATP setelah glikolisis. Hasil bersih jalur fermentatif tetap 2 ATP per glukosa, semuanya berasal dari glikolisis. Nilai penting fermentasi adalah pemulihan NAD+ agar glikolisis dapat berlanjut.
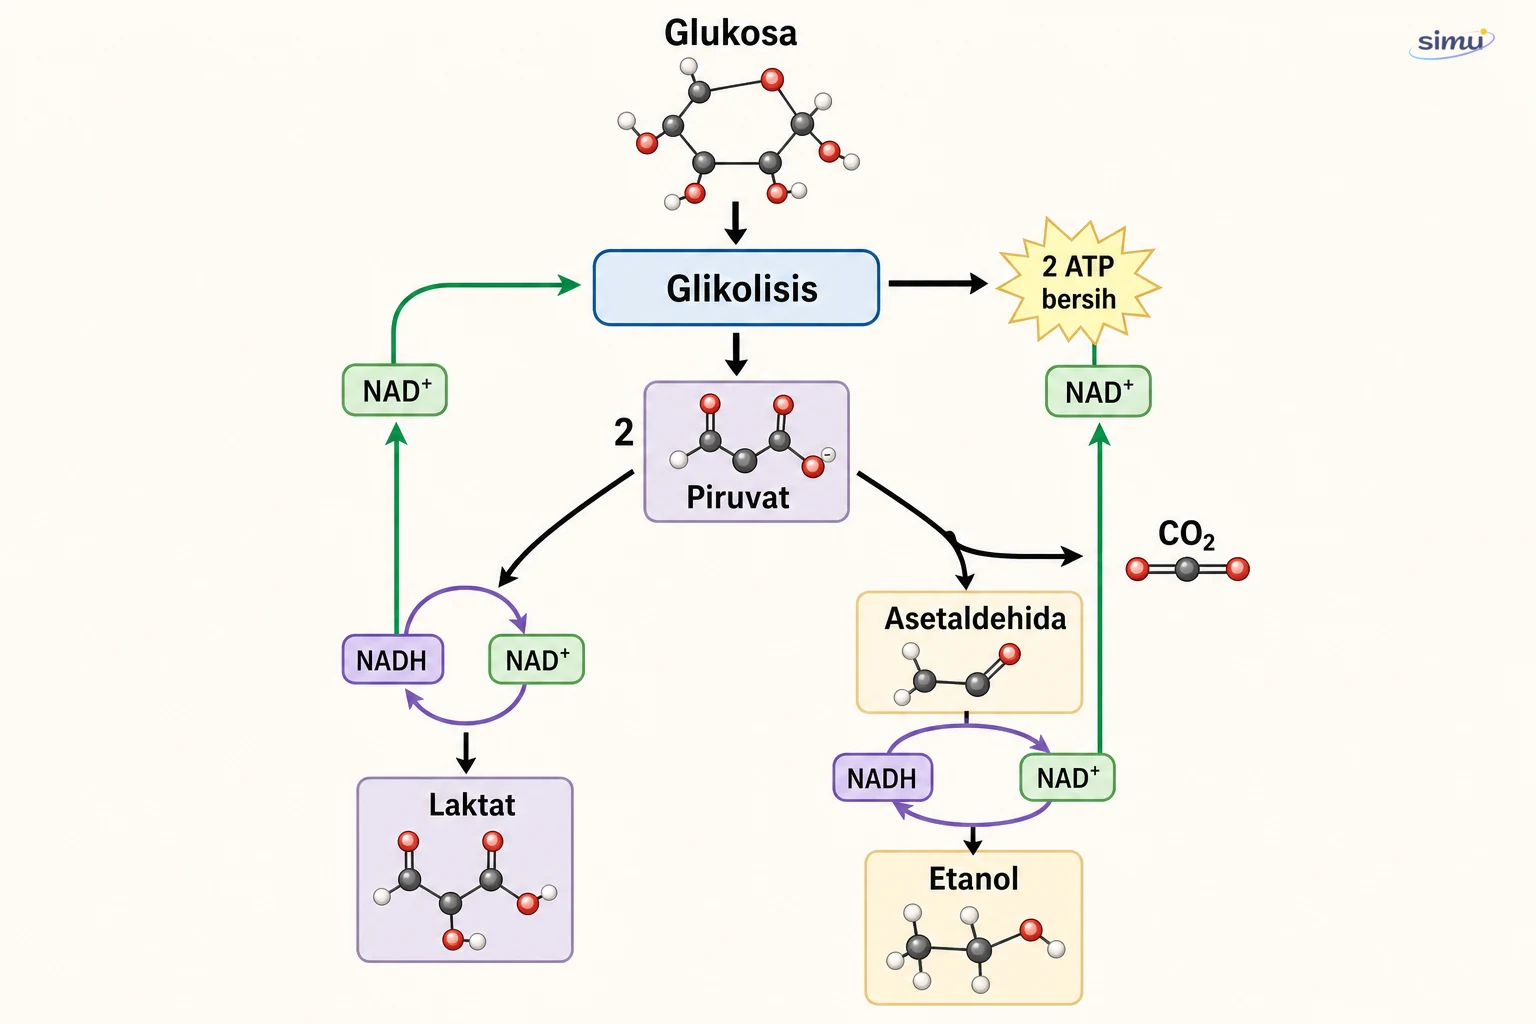
Gambar 6. Fermentasi laktat mereduksi piruvat tanpa melepas CO2, sedangkan fermentasi alkohol melepas CO2 sebelum asetaldehida direduksi menjadi etanol; keduanya meregenerasi NAD+ agar glikolisis berlanjut.
8. Fotosintesis: Mengubah Energi Cahaya menjadi Energi Kimia
Persamaan ringkas fotosintesis sering ditulis:
6CO2+6H2O+energi cahaya→C6H12O6+6O2
Persamaan itu adalah ringkasan bersih. Fotosintesis tidak membentuk glukosa dalam satu langkah. Reaksi terang menghasilkan ATP dan NADPH, sedangkan siklus Calvin menghasilkan G3P yang dapat digunakan untuk membentuk karbohidrat dan senyawa lain.
Struktur kloroplas
Membran tilakoid mengandung klorofil, fotosistem, rantai transpor elektron, dan ATP sintase. Ruang di dalam tilakoid disebut lumen. Cairan di luar tilakoid tetapi di dalam kloroplas disebut stroma; di sinilah enzim siklus Calvin bekerja.
Reaksi terang
Pada aliran elektron linear, urutan umumnya adalah:
- cahaya mengeksitasi elektron pada fotosistem II;
- air dipecah untuk mengganti elektron, menghasilkan elektron, H+, dan O2;
- elektron melewati rantai transpor yang membantu membangun gradien H+ di lumen;
- H+ mengalir melalui ATP sintase dan mendorong pembentukan ATP;
- cahaya mengeksitasi kembali elektron pada fotosistem I; dan
- elektron akhirnya digunakan untuk mereduksi NADP+ menjadi NADPH.
Gas O2 fotosintesis berasal dari pemecahan air, bukan dari karbon dioksida. Aliran elektron siklik di sekitar fotosistem I dapat menambah pembentukan ATP tanpa menghasilkan NADPH atau O2.
Siklus Calvin
Siklus Calvin berlangsung dalam tiga fase.
- Fiksasi karbon: enzim Rubisco menggabungkan CO2 dengan RuBP.
- Reduksi: ATP dan NADPH digunakan untuk membentuk G3P.
- Regenerasi: sebagian G3P dan ATP digunakan untuk membentuk kembali RuBP.
Untuk memperoleh satu G3P bersih, siklus menggunakan 3 CO2, 9 ATP, dan 6 NADPH. Dua G3P dapat menjadi bahan pembentukan satu glukosa, tetapi glukosa bukan produk langsung satu putaran siklus.
Istilah "reaksi gelap" dapat menyesatkan. Siklus Calvin tidak memakai foton secara langsung, tetapi bergantung pada ATP, NADPH, dan pengaturan enzim yang berkaitan dengan kondisi terang. Siklus bukan proses yang hanya berlangsung pada malam hari.
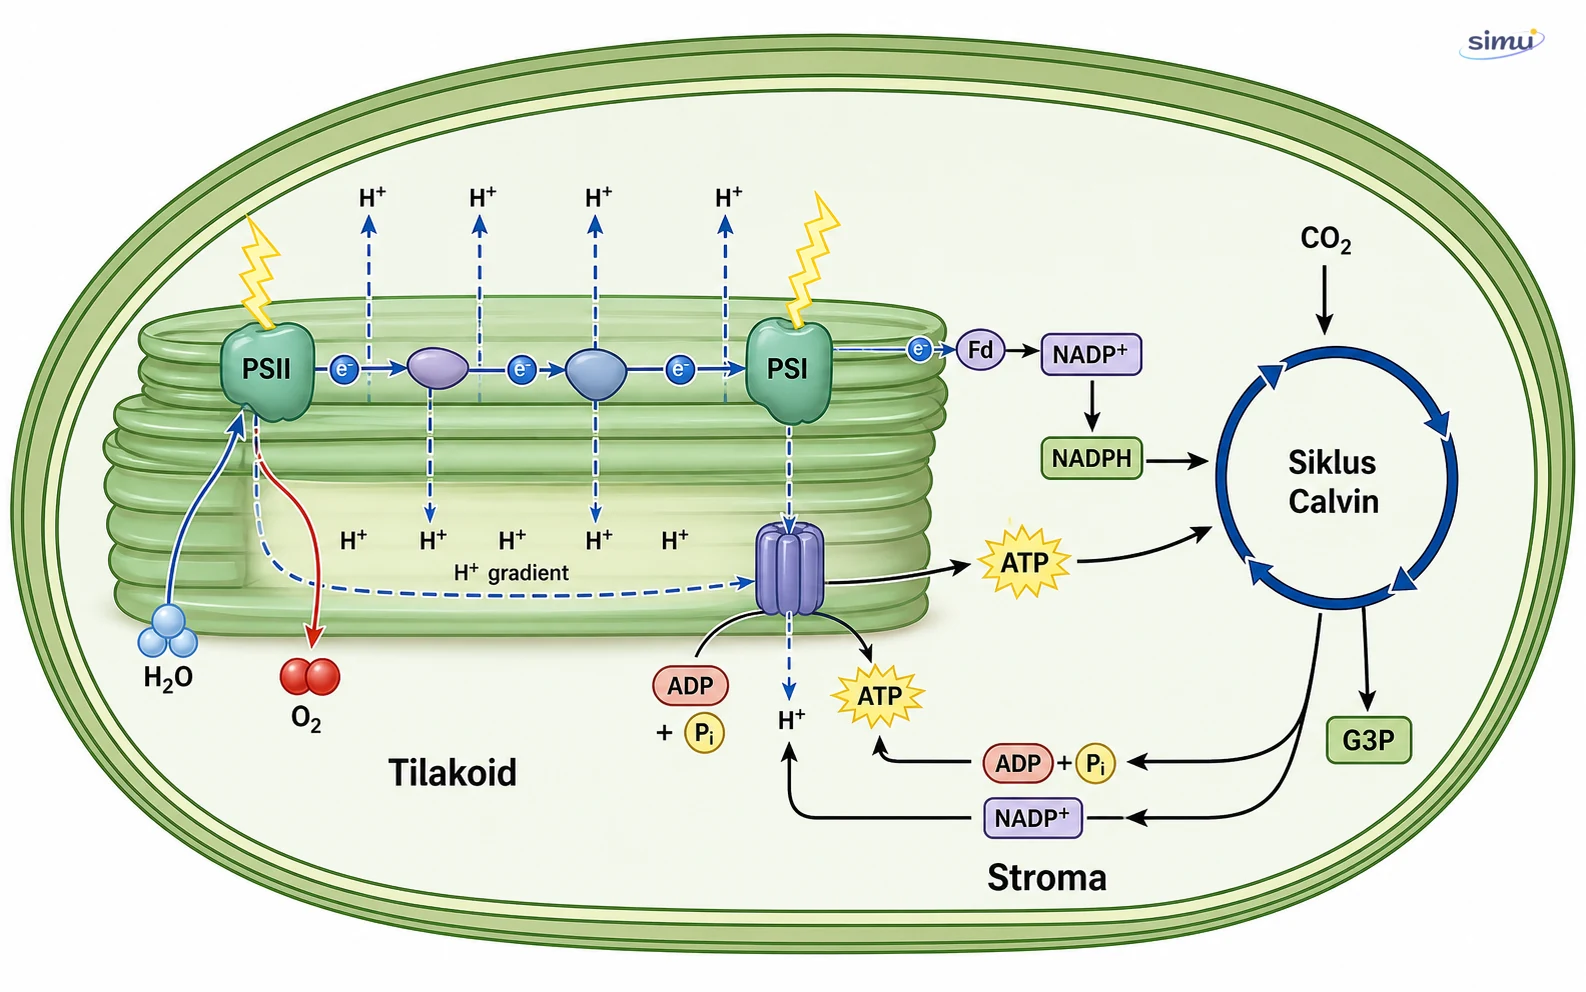
Gambar 7. Pemecahan air dan aliran elektron di membran tilakoid menghasilkan O2, ATP, dan NADPH. ATP serta NADPH digunakan di stroma untuk fiksasi CO2 dan pembentukan G3P, sedangkan ADP, Pi, dan NADP+ kembali ke reaksi terang.
9. Faktor Pembatas Fotosintesis
Laju fotosintesis dipengaruhi intensitas dan kualitas cahaya, konsentrasi CO2, suhu, ketersediaan air, bukaan stomata, jumlah pigmen, nutrisi, serta kondisi jaringan. Faktor-faktor itu saling berinteraksi.
Jika cahaya rendah menjadi faktor pembatas, peningkatan cahaya dapat menaikkan laju. Setelah mencapai titik jenuh, CO2, suhu, atau kapasitas enzim dapat menjadi pembatas baru. Cahaya terlalu kuat juga dapat merusak perangkat fotosintetik jika energi berlebih tidak dilepaskan dengan aman.
Titik kompensasi cahaya terjadi ketika laju penangkapan CO2 oleh fotosintesis sama dengan pelepasan CO2 melalui respirasi sehingga pertukaran CO2 bersih mendekati nol. Titik ini bukan berarti fotosintesis berhenti.
Kekurangan air dapat menutup stomata untuk mengurangi kehilangan air. Akibatnya, CO2 yang masuk menurun dan fotorespirasi dapat meningkat. Karena itu, menambahkan cahaya pada tanaman yang kekurangan air tidak selalu menaikkan hasil fotosintesis.
10. Fotorespirasi serta Strategi C3, C4, dan CAM
Rubisco dapat mengikat O2 selain CO2. Ketika Rubisco memulai jalur yang menggunakan O2, terjadi fotorespirasi. Proses ini mengonsumsi energi dan melepaskan kembali sebagian karbon sehingga menurunkan perolehan karbon bersih. Fotorespirasi cenderung meningkat ketika suhu tinggi dan stomata menutup sehingga perbandingan CO2 terhadap O2 di daun menurun.
Fotorespirasi tidak tepat disebut sama sekali tidak berguna. Jalur itu terhubung dengan metabolisme nitrogen dan dapat membantu menangani kondisi tertentu, walaupun secara agronomis sering mengurangi efisiensi penangkapan karbon.
Tumbuhan memiliki strategi berbeda untuk meningkatkan konsentrasi CO2 di sekitar Rubisco.
| Strategi |
Pemisahan awal CO2 dan siklus Calvin |
Kecenderungan kondisi |
| C3 |
keduanya berlangsung pada sel mesofil tanpa mekanisme pemekatan khusus |
banyak lingkungan sedang dan cukup air |
| C4 |
fiksasi awal di mesofil; CO2 dilepas dekat Rubisco pada sel seludang pembuluh |
efektif pada cahaya kuat dan suhu relatif tinggi |
| CAM |
stomata membuka terutama malam; CO2 disimpan sebagai asam organik lalu dilepas siang hari |
membantu menghemat air di lingkungan kering |
C4 menggunakan pemisahan ruang, sedangkan CAM menggunakan pemisahan waktu. Keduanya memerlukan energi tambahan. Tidak ada satu strategi yang selalu unggul pada semua lingkungan.
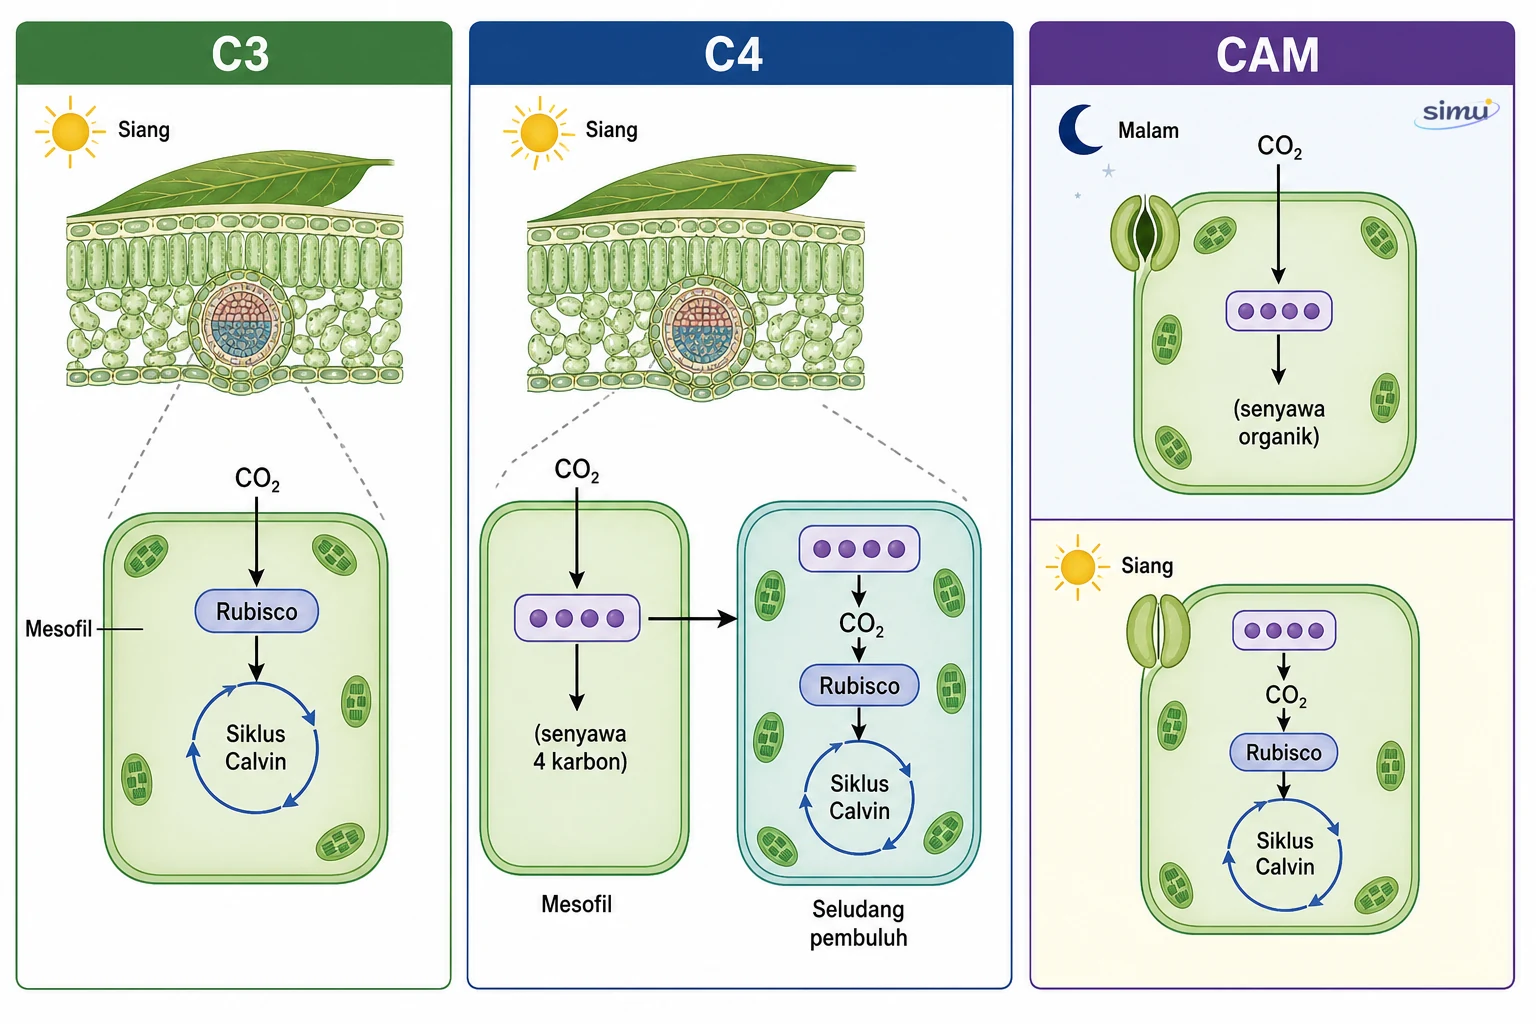
Gambar 8. Tumbuhan C3 memfiksasi CO2 langsung di sel mesofil; C4 memisahkan fiksasi awal dan siklus Calvin antara mesofil dan seludang pembuluh; CAM mengambil CO2 terutama malam hari dan melepaskannya untuk siklus Calvin pada siang hari.
11. Menghubungkan Respirasi dan Fotosintesis
Fotosintesis dan respirasi bukan sekadar kebalikan yang identik.
| Aspek |
Fotosintesis |
Respirasi seluler |
| arah energi utama |
energi cahaya ditangkap dalam molekul organik |
energi molekul organik dipindahkan ke ATP |
| sumber elektron utama |
air pada aliran linear |
molekul organik |
| akseptor elektron akhir utama |
NADP+ pada reaksi terang |
O2 pada respirasi aerob |
| gradien proton |
melintasi membran tilakoid |
melintasi membran dalam mitokondria |
| sintesis ATP |
fotofosforilasi |
fosforilasi oksidatif dan tingkat substrat |
Sel tumbuhan melakukan fotosintesis pada kloroplas dan respirasi pada mitokondria. Tumbuhan tetap melakukan respirasi siang maupun malam. Pada siang hari, pertukaran gas bersih dapat didominasi fotosintesis; hal itu tidak berarti respirasi berhenti.
12. Membaca Bukti Metabolisme secara Kritis
Satu gejala jarang membuktikan satu mekanisme. Busa dapat menunjukkan gas terbentuk, tetapi belum memastikan laju tanpa ukuran waktu. Daun yang tidak menghasilkan kenaikan CO2 bersih belum tentu berhenti berfotosintesis karena respirasi juga berlangsung. Kenaikan suhu yang mempercepat reaksi pada satu rentang belum membuktikan bahwa suhu tertinggi selalu terbaik.
Saat menilai data, periksa:
- variabel yang benar-benar diubah dan diukur;
- kontrol serta pengulangan;
- satuan dan rentang waktu;
- apakah laju dibedakan dari jumlah akhir;
- faktor pembatas lain; dan
- apakah kesimpulan sesuai cakupan data.
Ringkasan
- Enzim menurunkan energi aktivasi tanpa mengubah keseimbangan atau habis sebagai reaktan.
- Bentuk sisi aktif bersifat dinamis; model induksi cocok lebih lengkap daripada gembok-kunci.
- Suhu, pH, konsentrasi, inhibitor, dan regulasi sel memengaruhi aktivitas enzim.
- Katabolisme dan anabolisme dihubungkan oleh ATP serta pembawa elektron.
- Respirasi aerob eukariot umumnya menghasilkan sekitar 30-32 ATP per glukosa, bukan satu angka tetap untuk semua kondisi.
- Fermentasi meregenerasi NAD+; dua ATP bersihnya berasal dari glikolisis.
- Reaksi terang menghasilkan O2 dari air serta membentuk ATP dan NADPH.
- Siklus Calvin menggunakan ATP dan NADPH untuk menghasilkan G3P.
- Fotosintesis dipengaruhi faktor pembatas; C4 dan CAM membantu memekatkan CO2 dengan strategi berbeda.
Rujukan Penyusunan
- Capaian Pembelajaran dan ATP Biologi Fase F pada repositori CP/ATP.
- Biologi untuk SMA/MA Kelas XII edisi revisi, Bab 1 "Enzim dan Metabolisme", halaman 1-58.
- Buku Panduan Guru Biologi untuk SMA/MA Kelas XII, Bab 1, halaman 10-52.
Rujukan digunakan untuk memvalidasi cakupan dan urutan konsep. Uraian pada halaman ini disusun ulang secara orisinal serta memperjelas bagian yang berpotensi menimbulkan miskonsepsi.